
光合作用作为非平衡系统:HSC 化学
了解为甚么光合作用是一个非平衡过程,并从焓、熵、吉布斯自由能与持续能量输入加以解释。内容包括计算范例及具挑战性的 HSC 类型题目。
把二氧化碳和水放进一个烧瓶中,置于室温。给这个混合物充足的时间。你会预测最终会出现有实际数量的葡萄糖和氧气吗?
不会。然而,一片叶子却能利用这些相同的低能量起始物质,制造富含能量的碳水化合物,同时释放氧气。真正值得注意的,不只是光合作用需要光。更深一层的问题是:为甚么它需要持续的能量供应?
答案来自两个热力学概念:焓和熵。对光合作用的总反应而言,两者都不利于正向反应。活的植物仍然能制造葡萄糖,因为它并不是一个独立静置的平衡系统,而是一个受到驱动、开放的非平衡系统。
01这个化学反应在热力学上是「上坡」的
光合作用一个实用的总反应方程式是:
\[
\ce{6CO2(g) + 6H2O(l) -> C6H12O6(s) + 6O2(g)}
\]
这条方程式只是化学计量上的记录。真实的叶片并不是让六个二氧化碳分子与六个水分子碰撞,然后莫名其妙地产生一个葡萄糖分子。光合作用是透过许多彼此耦合的生化反应进行的。
尽管如此,总反应方程式仍让我们可以提出一个热力学问题:与反应物相比,产物是否天然较受有利?
可以把反应物和产物想像成山坡上的两个位置。如果产物的能量较低,化学变化便有能量上的理由向下进行。如果产物的能量较高,就必须由某些来源供应能量,把系统推上坡。
光合作用属于第二种情况。
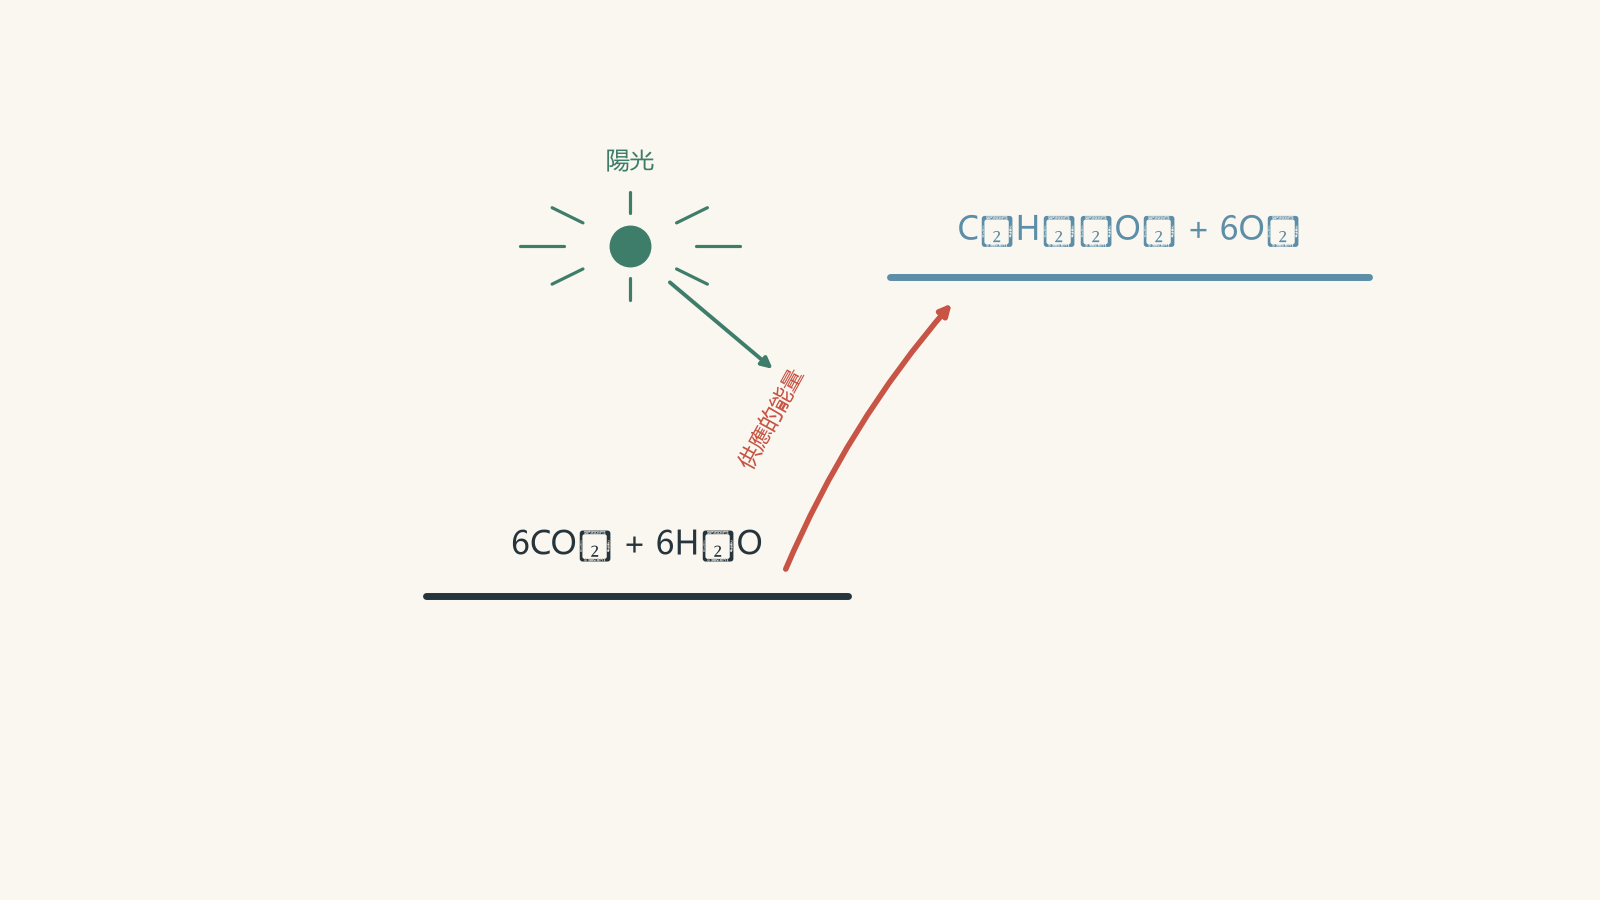
焓:葡萄糖储存化学能
焓 \(H\) 是与定压系统有关的一种能量量。对一个反应而言,
\[
\Delta H = H_{\text{产物}} – H_{\text{反应物}}
\]
对于透过光合作用形成一摩尔葡萄糖的总反应,一个具代表性的数值约为
\[
\Delta H \approx +2800\ \text{kJ mol}^{-1}
\]
正号非常重要。
它表示产物的焓高于反应物。当化学系统由二氧化碳和水转化为葡萄糖和氧气时,必须供应能量。
因此,光合作用整体而言是吸热的。
接下来要小心。很容易会说:「植物每制造一摩尔葡萄糖,就需要 \(2800\ \text{kJ}\) 的阳光能量。」这样太过简化。 \(\Delta H\) 是反应物与产物之间的状态函数差值。它并不是实际必须照射到叶片上的光能量测值,而且真实的光合作用并非百分之百有效率。
\(\Delta H>0\) 真正告诉我们的是,化学产物所储存的能量比起始物质更多。
范例:储存了多少焓?
一个光合作用系统产生 \(0.150\ \text{mol}\) 的葡萄糖。总反应的焓变为每摩尔葡萄糖 \(+2800\ \text{kJ mol}^{-1}\)。计算形成这个数量葡萄糖所对应的焓变。
步骤 1:确认这个焓值代表甚么。
\(+2800\ \text{kJ mol}^{-1}\) 表示在指定条件下,每形成一摩尔葡萄糖,便吸收 \(2800\ \text{kJ}\) 的能量。
步骤 2:乘以葡萄糖的物质的量。
\[
\Delta H
= n\Delta H_m
= (0.150\ \text{mol})(+2800\ \text{kJ mol}^{-1})
= +420\ \text{kJ}
\]
其中 \(n\) 是葡萄糖的物质的量,而 \(\Delta H_m\) 是摩尔焓变。
步骤 3:解释正负号的意义。
焓变为 \(+420\ \text{kJ}\)。正号表示葡萄糖形成时,化学系统的焓增加。
这些储存的能量,是葡萄糖之后能够作为燃料的原因之一。
02熵同样不利于光合作用
如果焓就是全部的故事,我们可以在这里停下来。但事实并非如此。
反应亦会受到熵 \(S\) 的影响。
熵常被描述为「混乱程度」。这有时可以作为初步理解,但并不是精确定义。较好的理解方式是:熵衡量一个系统中的物质和能量有多少种可用的微观排列方式。
可能的排列方式越多,熵通常越高。
想像把六位朋友安排在一张很小的餐桌旁,每人都有指定座位;再比较让他们在一个大型派对中自由走动。派对中有更多可能的排列方式。这在某种程度上类似熵的概念。
这个比喻也有其限制,因为分子并不在意社交上的尴尬,而且热力学熵是根据微观能态计算,而不是根据肉眼可见的凌乱程度。
对一个反应而言,
\[
\Delta S = S_{\text{产物}} – S_{\text{反应物}}
\]
在具代表性的标准条件下,光合作用的 \(\Delta S\) 为负值。
这一点可能不像焓的结果那么直观。总反应方程式两边都有六摩尔气体,所以单纯计算气体分子的数目,并不能决定答案。
以下近似的标准摩尔熵数值可说明实际情况:
| 物质 | 近似 \(S^\circ\),单位为 \(\text{J mol}^{-1}\text{K}^{-1}\) |
|---|---|
| \(\ce{CO2(g)}\) | 214 |
| \(\ce{H2O(l)}\) | 70 |
| \(\ce{C6H12O6(s)}\) | 212 |
| \(\ce{O2(g)}\) | 205 |
原本位于小分子中的原子,有一部分变成受到较大葡萄糖分子结构的限制。使用实际的熵数据可以确认,化学系统的总熵下降。
因此,「产物看起来更有组织」只是一种直观理解。熵变的正负最终应由熵数据判断,而不是看哪一幅分子图画得更整齐。
范例:计算熵变
利用上表的标准摩尔熵数值,计算下列反应的 \(\Delta S^\circ\):
\[
\ce{6CO2(g) + 6H2O(l) -> C6H12O6(s) + 6O2(g)}
\]
并解释结果的意义。
步骤 1:把产物的熵贡献相加。
\[
S^\circ_{\text{产物}}
= (1)(212)+(6)(205)
=1442\ \text{J mol}^{-1}\text{K}^{-1}
\]
步骤 2:把反应物的熵贡献相加。
\[
S^\circ_{\text{反应物}}
=(6)(214)+(6)(70)
=1704\ \text{J mol}^{-1}\text{K}^{-1}
\]
步骤 3:计算反应熵变。
\[
\Delta S^\circ
=1442-1704
=-262\ \text{J mol}^{-1}\text{K}^{-1}
\]
步骤 4:解释结果。
负值表示,在这些标准态假设下,产生一摩尔葡萄糖后,化学系统可达到的微观排列方式较少。
因此,熵和焓一样,都不利于光合作用的正向反应。
03焓和熵正朝著同一方向作用
对光合作用而言:
| 热力学因素 | 正负号 | 对正向光合作用的影响 |
|---|---|---|
| 焓变,\(\Delta H\) | 正 | 不利于反应 |
| 熵变,\(\Delta S\) | 负 | 不利于反应 |
这个组合尤其不利。
结合焓和熵的一个实用方式,是使用吉布斯自由能:
\[
\Delta G=\Delta H-T\Delta S
\]
其中:
- \(\Delta G\) 是吉布斯自由能变化,
- \(\Delta H\) 是焓变,
- \(T\) 是以开尔文为单位的绝对温度,而
- \(\Delta S\) 是熵变。
如果 \(\Delta H>0\) 且 \(\Delta S<0\),就要仔细看第二项。由于 \(T\) 为正,
\[
-T\Delta S
\]
也是正值。
因此,两项贡献都令 \(\Delta G\) 为正。
使用 \(\Delta H=+2800\ \text{kJ mol}^{-1}\)、\(\Delta S=-262\ \text{J mol}^{-1}\text{K}^{-1}\) 和 \(T=298\ \text{K}\),先把熵的单位换算成千焦耳:
\[
-262\ \text{J mol}^{-1}\text{K}^{-1}
=-0.262\ \text{kJ mol}^{-1}\text{K}^{-1}
\]
然后:
\[
\begin{aligned}
\Delta G
&=\Delta H-T\Delta S\\
&=2800-(298)(-0.262)\\
&=+2878\ \text{kJ mol}^{-1}
\end{aligned}
\]
这个很大的正值告诉我们,在这些条件下,整体化学反应的正向过程在热力学上非常不利。
这正是我们一开始提出的疑问。二氧化碳和水不会只是放著,然后逐渐变成葡萄糖。
04那么,阳光实际上在做甚么?
一个常见的答案是:「阳光为反应提供活化能。」
这并不完整。
活化能是反应途径必须跨越的能量障碍。降低这个障碍可以令反应加快,但不会改变初始状态与最终状态之间的能量差。
想像你要把购物手推车从一个山谷底部推到另一个位置更高的山谷。催化剂就像找到一条较低的山口。它可以令过程更容易,但手推车最后的位置仍然比起点高。
光合作用需要的不只是较低的山口。它还需要一个能量来源。
被光合色素吸收的光会产生电子激发态。透过一系列耦合反应,这些能量被用来形成具有较高化学能的中间物,包括 ATP 和还原型电子载体。这些中间物之后协助驱动把二氧化碳固定成碳水化合物的反应。
实际的生物化学机制比这里的热力学论证更加复杂。重要的一点很简单:
酶提供反应途径。阳光提供外部能量,使整体过程持续偏离平衡。
加热叶片并不等同于照射叶片。在相同温度下的随机热能,不能完成与被吸收的光子驱动特定电子跃迁相同的工作。
05为甚么这使光合作用成为非平衡系统
在热力学平衡时,系统没有任何宏观上的净变化趋势。对可逆反应而言,正向和逆向过程在微观层面仍可能发生,但两者速率互相平衡。
活的光合细胞则不同。
它会持续:
- 吸收辐射能,
- 吸收二氧化碳和水,
- 透过耦合反应传递能量,
- 产生并输出物质,
- 维持浓度梯度和电化学梯度,以及
- 向周围环境释放能量,包括以热的形式。
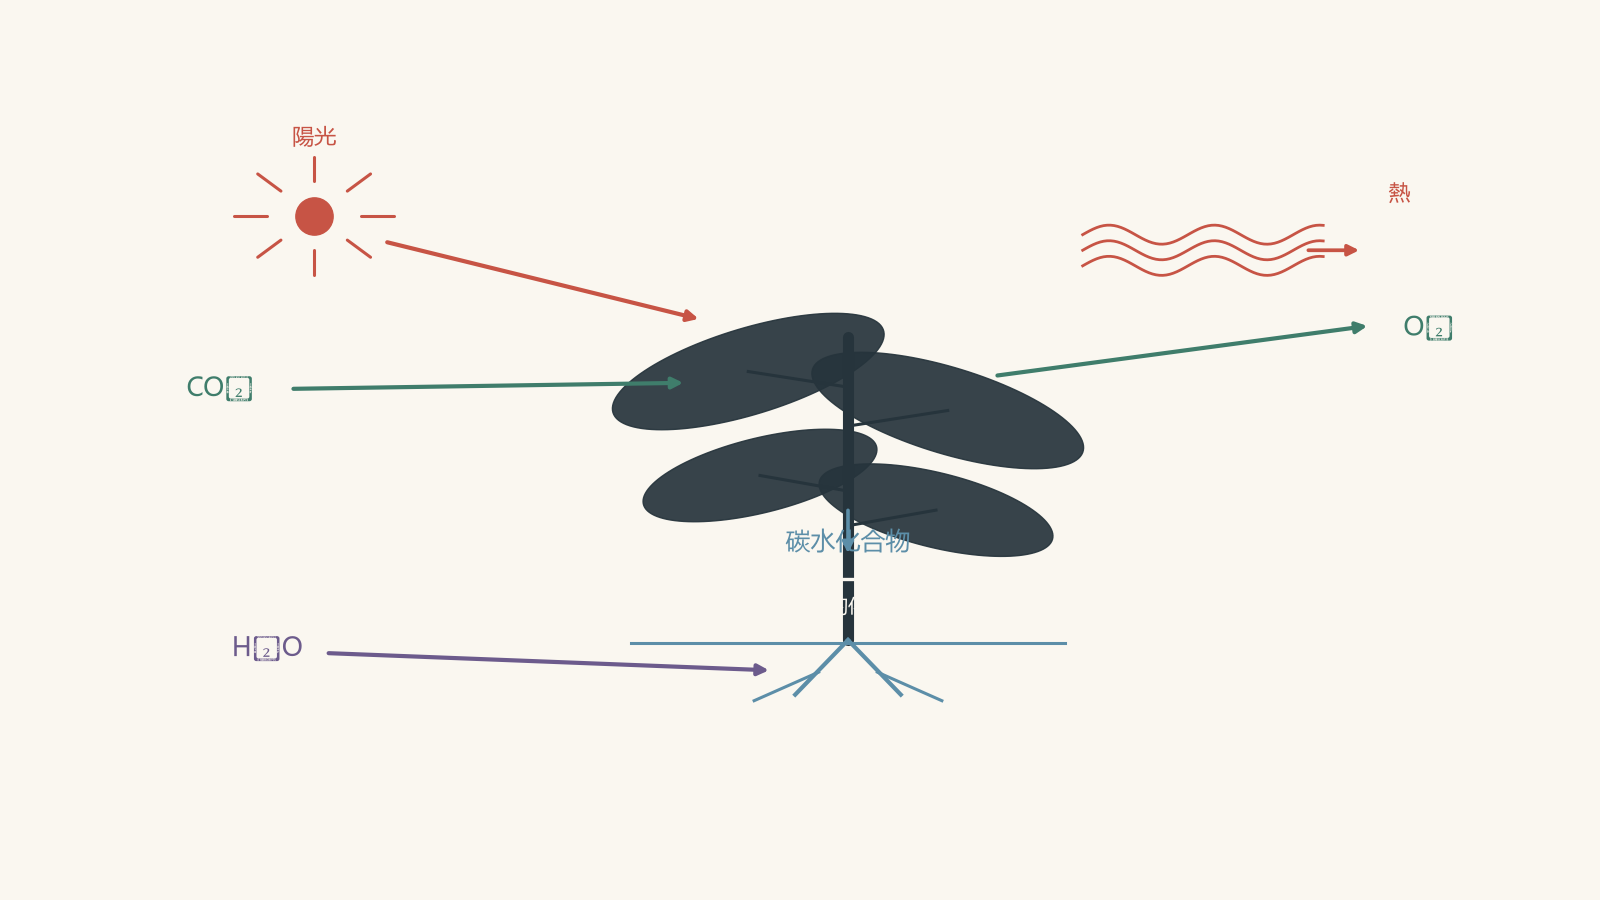
因此,植物在物质和能量方面都是一个开放系统。
它的化学组成透过持续的流动而维持在偏离热力学平衡的状态。一旦这些流动停止,这个状态就无法无限期维持。
这与静态平衡和动态平衡之间有一个重要区别。浓度保持不变,并不自动代表系统处于平衡。即使物质和能量仍持续流经系统,某些浓度仍可以保持大致稳定。
这种状态称为非平衡稳态。
想像一个浴缸,水龙头开著,而排水口也打开。只要进水速率与排水速率相同,水位就可以完全保持不变。水位保持不变,并不能证明水已停止流动。
光合细胞也可以有类似的情况。即使反应不断消耗和再生物质,某些物质的浓度仍能维持在狭窄范围内。
这个浴缸比喻最终仍有其限制,因为化学反应涉及自由能差和微观状态,而不只是水的流动。不过,它给我们一个重要警示:「没有变化」和「处于平衡」并不是同义词。
06光合作用并不违反热力学第二定律
这里有一个很容易想到的质疑。
如果熵倾向增加,而光合作用有 \(\Delta S_{\text{系统}}<0\),那么光合作用怎么可能发生?
因为第二定律并不是说每一个小型系统的熵都必须永远增加。
它适用于系统与周围环境的总熵变:
\[
\Delta S_{\text{宇宙}}
=
\Delta S_{\text{系统}}
+
\Delta S_{\text{周围环境}}
\]
叶片可以出现局部熵下降,因为它并不是孤立系统。能量以辐射形式进入,植物内部的能量转换会产生熵,而能量最后会以更分散的形式离开,包括以热的形式。
因此,制造碳水化合物所伴随的熵下降,只是整体熵收支的一部分。
整理房间可以提供一个粗略的比喻。你可以把所有物品分类放进抽屉,降低房间的「凌乱程度」,但你消耗了来自食物的化学能、产生了热,并影响了周围环境。局部的有序化并不是免费出现的。
再次强调,真正的热力学熵并不等同于字面上的凌乱。这个比喻真正有用的地方在于系统边界:局部熵下降并不能告诉你总熵变是多少。
07三个值得消除的误解
「吸热反应不可能自发发生」
不一定。
吸热反应的 \(\Delta H>0\),但如果熵变足够正,有时可以补偿这一点。
光合作用特别不利,因为它同时具有 \(\Delta H>0\) 和 \(\Delta S<0\)。在这里,焓和熵并不是互相竞争,而是两者都不利于正向化学反应。
「阳光把平衡向右移」
这种说法有风险。
一般的勒沙特列原理描述的是平衡系统如何回应浓度、压力或温度等变化。光合作用则是一个由光驱动、维持在偏离平衡状态的反应网络。
光并不只是另一个可以加入平衡表达式中的浓度项。它持续为激发态和耦合反应供应能量。
「催化剂可以令光合作用在黑暗中进行」
催化剂可以透过降低活化能改变反应速率。它不能改变 \(\Delta H\)、\(\Delta S\),也不能改变固定温度下的平衡位置。
如果整体过程需要外部自由能来源,降低活化能障碍并不能提供这些能量。
08逆向过程让对比更加清楚
现在把总反应方程式反转:
\[
\ce{C6H12O6(s) + 6O2(g) -> 6CO2(g) + 6H2O(l)}
\]
各个符号亦会反转。
对逆向反应而言,
\[
\Delta H<0
\]
而使用相同的标准态比较,
\[
\Delta S>0
\]
这个组合强烈有利于葡萄糖氧化的正向进行。
这与燃烧的热力学情况和光合作用相反的原因密切相关。光合作用把外部供应的能量储存在化学产物中;碳水化合物被氧化时,则可以释放这些储存的化学能。
不要因此把它理解成「光合作用就是在叶片内把燃烧反过来进行」。虽然总反应方程式可以互相反转,但实际的反应途径和机制完全不同。
09问题与解答
问题 1
光合作用总反应的焓变为每摩尔葡萄糖 \(+2800\ \text{kJ mol}^{-1}\)。
一株植物产生 \(0.0300\ \text{mol}\) 的葡萄糖。
计算这个生产过程所对应的焓变,并说明正负号的意义。
解答 1
焓变为 \(+84.0\ \text{kJ}\),表示葡萄糖形成时,化学系统的焓增加。
所使用的关系式是
\[
\Delta H=n\Delta H_m
\]
其中 \(n\) 是葡萄糖的物质的量,而 \(\Delta H_m\) 是摩尔焓变。
代入数值:
\[
\begin{aligned}
\Delta H
&=(0.0300\ \text{mol})(+2800\ \text{kJ mol}^{-1})\\
&=+84.0\ \text{kJ}
\end{aligned}
\]
正号显示光合作用整体而言是吸热的。
一个很容易犯的错误,是把 \(84.0\ \text{kJ}\) 理解为必须照射到植物上的精确阳光能量。事实并非如此。这是指定化学变化的焓差。真实的光合作用系统需要更多入射光能,因为能量的传递和转换并非完全有效率。
问题 2
在一个简化的光合作用热力学分析中,假设
\[
\Delta H=+2800\ \text{kJ mol}^{-1}
\]
以及
\[
\Delta S=-0.262\ \text{kJ mol}^{-1}\text{K}^{-1}.
\]
计算 \(298\ \text{K}\) 和 \(330\ \text{K}\) 时的 \(\Delta G\)。
一名学生声称,由于光合作用是吸热反应,所以提高温度必定令光合作用在热力学上更有利。评估这项说法。
解答 2
这名学生的说法不正确:在 \(298\ \text{K}\) 时,\(\Delta G\) 约为 \(+2878\ \text{kJ mol}^{-1}\);在 \(330\ \text{K}\) 时,约为 \(+2886\ \text{kJ mol}^{-1}\)。因此,在这个简化模型中,随著温度升高,正向化学反应反而会变得稍微更不利。
使用
\[
\Delta G=\Delta H-T\Delta S.
\]
在 \(298\ \text{K}\) 时:
\[
\begin{aligned}
\Delta G
&=2800-(298)(-0.262)\\
&=2800+78.1\\
&=+2878.1\ \text{kJ mol}^{-1}
\end{aligned}
\]
在 \(330\ \text{K}\) 时:
\[
\begin{aligned}
\Delta G
&=2800-(330)(-0.262)\\
&=2800+86.5\\
&=+2886.5\ \text{kJ mol}^{-1}
\end{aligned}
\]
容易想到的做法,是记住提高温度会有利于平衡中的吸热方向,然后就此停止分析。
但这忽略了熵这个条件。由于 \(\Delta S\) 为负,\(-T\Delta S\) 这一项为正。增加 \(T\) 会令这个正值贡献变得更大。
这并不表示真实植物的光合作用速率只要温度上升就一定下降。反应速率还取决于动力学、酶的行为、气体交换和其他生物因素。热力学上是否有利与反应速率,是两个不同的问题。
问题 3
把一株受光照的植物放入一个实验室反应室中。
数小时后,测量显示几种代谢物的浓度保持大致不变。然而,同位素示踪显示,碳原子持续进入碳水化合物,之后又透过代谢回到二氧化碳。整个实验期间,灯一直亮著。
一名学生因为测得的浓度保持不变,所以认为系统已达到动态平衡。
评估这个结论。
解答 3
这个系统更适合描述为非平衡稳态,而不能单纯视为动态平衡。
这名学生的论点很容易令人信服,因为宏观浓度保持不变确实是平衡的一项特征。然而,只有浓度保持不变,并不足以证明系统处于平衡。
关键观察包括:
- 辐射能持续由灯输入,
- 碳持续流经各种化学途径,以及
- 系统在这些流动持续进行时仍维持其组成。
这就像一个水箱,因为进水速率和出水速率相同,所以水位保持不变。水位不变并不表示水已停止流动。
在热力学平衡时,不存在维持有组织化学通量流经系统的净驱动力。而在这里,灯提供外部能量,使反应网络保持偏离平衡。
同位素证据尤其重要。它显示表面上保持不变的组成之下,其实隐藏著持续而有方向性的化学处理。
关掉灯会移除一项重要的能量输入。系统不会立即成为平衡系统,因为当中仍有已储存的化学能和持续进行的反应,但它将无法无限期维持相同的光驱动非平衡状态。
问题 4
考虑以下理想化循环。
首先,透过光合作用产生一摩尔葡萄糖:
\[
\ce{6CO2 + 6H2O -> C6H12O6 + 6O2}
\]
其中
\[
\Delta H=+2800\ \text{kJ mol}^{-1},
\qquad
\Delta S=-262\ \text{J mol}^{-1}\text{K}^{-1}.
\]
然后,同一摩尔葡萄糖透过完全相反的总反应完全氧化。
在最后,\(\ce{CO2}\)、\(\ce{H2O}\)、\(\ce{C6H12O6}\) 和 \(\ce{O2}\) 的数量与开始时完全相同。
一名学生提出:
「焓变和熵变互相抵消,所以整个循环甚么也没有做到。它可以在没有任何净能量输入的情况下永远重复。」
解释这个论点错在哪里。
解答 4
化学状态的变化确实互相抵消,但完整过程并没有令宇宙中的每一部分都回到初始状态:外部能量已被转移并劣化,因此这个循环不可能免费地永远运行。
对光合作用而言,
\[
\Delta H_{\text{光合作用}}=+2800\ \text{kJ mol}^{-1}.
\]
对完全相反的反应而言,
\[
\Delta H_{\text{逆反应}}=-2800\ \text{kJ mol}^{-1}.
\]
因此,
\[
\Delta H_{\text{化学循环}}=0.
\]
同样地,如果第二个反应正好是热力学上的完全逆反应,
\[
\Delta S_{\text{化学循环}}
=-262+262
=0\ \text{J mol}^{-1}\text{K}^{-1}.
\]
很容易在这里停下来,然后得出「绝对甚么都没有改变」的结论。
问题在于所选取的系统边界。
光合作用需要外部能量来源。在完整循环期间,高品质的入射辐射能最终可以转化成更分散的能量,包括传递到周围环境的热。各种化学物质的数量可以回到原本数值,但这些物质以外的能量储库并没有回到原本状态。
因此,正确的能量与熵收支必须把周围环境包括在内,而不能只考虑平衡方程式中的四种物质。
不存在一个可以免费产生有用化学能的永动循环。光合作用阶段需要自由能来源,而不可逆的能量转换会在其他地方产生熵。
所以,看似奇怪的结果–净化学 \(\Delta H\) 为零,而净化学 \(\Delta S\) 亦为零–与第二定律完全一致。它只告诉我们,化学上的初始状态和最终状态相同。
问题 5
两个理想化的光合作用系统包含相同的化学反应网络。忽略生物老化,并假设当中的物质可以无限循环利用。
在系统 A 中,没有物质穿过边界,但外部来源持续供应光。废热亦可以离开系统,使其温度保持在 \(298\ \text{K}\)。
在系统 B 中,灯和一颗充满电但容量有限的电池都被放置在一个完全隔热、密封的容器内。没有任何物质或能量可以穿过外部边界。最初,灯的光照强度与系统 A 相同,而光合作用物质的表现亦完全相同。
一名学生认为,两个系统都应该能够无限期维持光合作用,因为「两者都包含持续的光源」。
根据上述理想化条件,判断哪一个系统原则上可以无限期维持非平衡稳态。利用系统边界、焓和熵来解释另一个系统最终会发生甚么。
解答 5
只有系统 A 原则上可以无限期维持所述的非平衡稳态;系统 B 则不能,因为它表面上的「能量来源」实际上是孤立系统内部的一个有限部分。
关键在于系统边界的位置。
在系统 A 中,辐射能持续由外部来源穿过边界进入系统。系统也可以把废热输出。即使物质在内部循环使用,能量仍持续流经整个系统。
这种能量流可以维持远离热力学平衡的化学状态。与葡萄糖形成有关的正焓变和负化学熵变,可以由光合作用反应本身以外所发生的变化支撑。
系统 B 一开始看起来十分相似。灯会发光、形成激发态,也可能产生葡萄糖。
因此,很容易得出结论,认为在两种情况中,灯都是外部驱动来源。
但事实并非如此。
对系统 B 而言,电池和灯都在系统边界之内。电池中储存的自由能,是这个孤立系统初始状态的一部分。随著电池放电,这个有限的可用能量储存会逐渐减少。
能量仍然守恒,但它会逐渐变得较难用于维持有组织的梯度,以及驱动需吸收自由能的化学反应网络。不可逆过程亦会令孤立系统的总熵增加。
最终,电池将无法再维持光驱动反应。浓度梯度会衰减,可用的自由能差会耗尽,而孤立系统会逐渐趋向热力学平衡。
这正说明了为甚么「能量来源」这个词在未说明系统边界时可能会造成误导。放在孤立箱子内的一颗充电电池,并不是永久的外部供应。它只是在箱子内部的另一个自由能储库。
这项区别正是理解光合作用作为非平衡系统的核心:植物之所以能维持不寻常的化学状态,并不只是因为当中存在正确的分子和催化剂,而是因为有可用能量持续流经系统。一旦理解这一点,平衡、燃烧、生物能量储存,以及其他受驱动的化学系统之间的关系,就会变得容易理解得多。